액틴, 미오신, 그리고 근수축의 원리
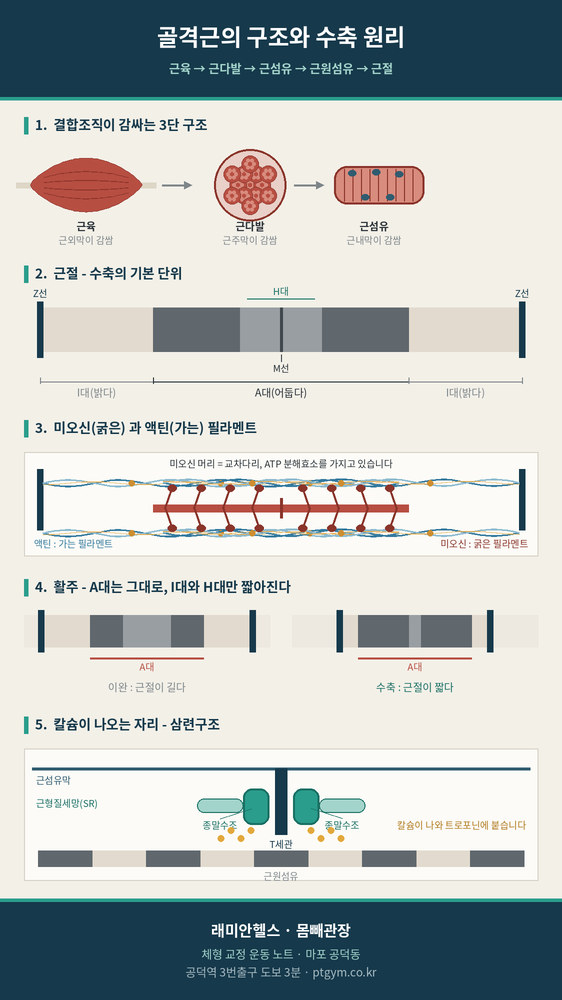
2. 필라멘트는 줄어들지 않습니다. 미끄러져 겹칠 뿐입니다. 그래서 A대 길이는 그대로고 I대와 H대만 짧아집니다.
3. 근절의 길이에 따라 낼 수 있는 힘이 달라집니다. 체형 교정 운동이 필요한 생리학적 이유가 여기에 있습니다.
회원분들께 "이 근육이 약해져 있어서 힘을 못 씁니다"라고 말씀드릴 때가 있습니다. 그런데 왜 약해지는지, 왜 어떤 자세에서는 잘 되고 어떤 자세에서는 안 되는지를 설명하려면 결국 근육 안쪽 구조까지 내려가야 합니다.
공부 노트를 정리하는 김에 자료를 다시 찾아보면서, 제가 잘못 적어둔 부분도 몇 군데 고쳤습니다. 그 부분은 본문에 따로 표시해 두었습니다.
사람 몸에는 골격근이 몇 개나 있을까요. 흔히 650개라고 말하지만 자료마다 600개에서 840개까지 차이가 납니다. 해부학자마다 대퇴사두근을 하나로 셀지 넷으로 셀지가 다르기 때문입니다. 가장 많이 쓰이는 숫자는 640개(320쌍)입니다.
성인 468명을 조사한 연구에서 골격근이 체중에서 차지하는 비율은 남성 38.4%, 여성 30.6%였습니다. 절대량으로는 남성 33kg, 여성 21kg이었습니다.
그러니 "40~45%"는 남성 기준으로도 조금 높게 잡은 숫자입니다. 실제로는 30~40% 사이로 보시는 게 맞습니다. 잘 훈련된 분은 이보다 위에 있을 수 있습니다.
골격근 하나는 수천 개의 근섬유(근세포)와 이를 묶는 결합조직으로 이루어집니다. 이 결합조직이 세 겹이라는 게 핵심입니다.
▪ 근주막(Perimysium) — 근섬유들을 묶은 근다발을 감쌉니다
▪ 근외막(Epimysium) — 근육 전체를 감쌉니다
제 노트에는 "근외막으로 둘러싸인 근육다발"이라고 적혀 있었는데, 근다발을 감싸는 건 근외막이 아니라 근주막입니다. 근외막은 근육 통째를 감싸는 제일 바깥층입니다.
순서로 정리하면 이렇습니다.
근섬유(근내막) → 근다발(근주막) → 근육(근외막) → 힘줄로 이어져 뼈에 붙음
이 세 겹은 결국 힘줄로 합쳐져 뼈에 붙습니다. 근육이 만든 힘이 뼈까지 전달되는 통로가 이 막들입니다. 그래서 근막 이완이니 근막 경선이니 하는 이야기가 나오는 것이고, 근육만 따로 떼어 생각하면 안 되는 이유이기도 합니다.
근원섬유는 근절이 수백, 수천 개 직렬로 이어진 긴 줄입니다. 실제로 수축이라는 일이 벌어지는 최소 단위는 그 줄 안의 한 칸, 즉 Z선과 Z선 사이입니다.
구조를 안쪽에서 바깥쪽으로 다시 세워보면 이렇습니다.
→ 근절 (Z선과 Z선 사이, 수축의 기본 단위)
→ 근원섬유 (근절이 직렬로 이어진 것)
→ 근섬유 (근원섬유 다발, 근내막이 감쌈)
→ 근다발 (근주막이 감쌈)
→ 근육 (근외막이 감쌈)
굵은 필라멘트 하나를 가는 필라멘트 여섯 개가 육각형으로 둘러쌉니다. 반대로 보면 가는 필라멘트 하나는 굵은 것 세 개에 둘러싸입니다. 이 배열이 근육 전체에 반복되기 때문에 현미경으로 보면 가로무늬가 보입니다. 골격근과 심근을 횡문근이라 부르는 이유입니다.
현미경으로 볼 때 밝고 어두운 띠가 번갈아 나타납니다. 이 띠들의 이름입니다.
A대 — 미오신 필라멘트가 있는 구간 전체. 어둡습니다. A는 Anisotropic의 A인데, 관장님 방식대로 "A는 어둡다"로 외우면 편합니다.
I대 — 액틴만 있고 미오신은 없는 구간. 밝습니다. 한 근절의 A대와 다음 근절의 A대 사이에 있고, 그 한가운데를 Z선이 지납니다.
H대 — A대 안에서 미오신만 있고 액틴이 닿지 않은 구간. A대보다 조금 밝습니다.
M선 — H대 한가운데. 미오신 필라멘트를 서로 붙들어 주는 구조입니다.
두 팀이 각자 관찰한 결론은 같았습니다. 근육이 수축할 때 A대의 길이는 변하지 않고 I대와 H대만 짧아진다는 것이었습니다.
필라멘트 자체가 줄어든다면 A대도 같이 짧아져야 합니다. 그런데 안 짧아집니다. 그래서 필라멘트는 그대로 있고 서로 미끄러져 겹치는 것이라는 결론이 나왔습니다. 이게 활주설(Sliding Filament Theory)입니다.
▪ 트로포미오신 — 그 홈을 따라 길게 걸쳐진 실입니다. 평소에는 이 실이 활성점을 덮고 있습니다.
▪ 트로포닌 — 트로포미오신 위에 일정 간격으로 붙은 조절 단백질입니다. 칼슘이 여기에 붙습니다.
▪ 머리 — 골프 클럽 헤드처럼 튀어나온 부분입니다. 액틴의 활성점에 붙어 교차다리(Cross bridge)를 만듭니다.
▪ 머리에는 ATP 분해효소(ATPase)가 있습니다. 여기서 ATP를 쪼개 나온 에너지로 머리가 젖혀집니다.
미오신 머리는 M선을 기준으로 좌우 반대 방향을 향합니다. 그래서 양쪽 액틴을 동시에 안쪽으로 끌어당길 수 있습니다.
티틴은 용수철처럼 작동해서, 근육을 늘렸을 때 느껴지는 저항(수동 장력)의 상당 부분을 담당합니다. 스트레칭할 때 당기는 느낌의 일부가 여기서 옵니다. 가는 필라멘트 쪽에는 네불린(Nebulin)이 길이를 재는 자 역할을 합니다.
근원섬유 사이사이를 근형질세망(SR, Sarcoplasmic Reticulum)이 그물처럼 감싸고 있습니다. 이 안에 칼슘이 저장되어 있습니다. 칼슘 창고인 셈입니다.
T세관은 근섬유막(세포막)이 안쪽으로 움푹 들어간 관입니다. 세포 바깥 공간과 이어져 있습니다. SR과는 막으로 분리되어 있어서 서로 통하지 않습니다.
T세관의 역할은 전기 신호를 근섬유 깊숙한 곳까지 동시에 전달하는 것입니다. 표면에서만 신호가 전해지면 바깥쪽 근원섬유만 먼저 수축하고 안쪽은 늦게 수축해서 힘이 어긋납니다.
신호는 이렇게 전달됩니다. T세관 막의 DHPR이라는 단백질이 전압 변화를 감지하면, 바로 옆 SR 막의 RyR1이라는 칼슘 통로를 물리적으로 밀어서 엽니다. 화학물질이 오가는 게 아니라 두 단백질이 직접 맞물려 있습니다. 심장근은 이 방식이 다릅니다.
종말수조 - T세관 - 종말수조
이 세 개가 나란히 놓인 구조가 삼련구조입니다. 골격근에서는 근절 하나당 두 군데, A대와 I대가 만나는 자리에 있습니다.
이 좁은 틈에서 DHPR과 RyR1이 격자 모양으로 짝을 지어 배열되어 있다는 사실이 최근 초저온 전자현미경 연구로 확인됐습니다.
2. 활동전위가 T세관을 따라 안쪽까지 들어갑니다.
3. DHPR이 RyR1을 열고, SR에서 칼슘이 쏟아져 나옵니다.
4. 칼슘이 트로포닌에 붙습니다. 트로포미오신이 옆으로 밀려나면서 액틴의 활성점이 드러납니다.
5. 미오신 머리가 활성점에 붙어 교차다리를 만듭니다.
6. 머리가 노 젓듯 젖혀지며 액틴을 M선 쪽으로 끌어당깁니다.
7. 새 ATP가 붙으면 머리가 액틴에서 떨어집니다. ATP를 쪼개 다시 세워지고 처음으로 돌아갑니다.
8. 신호가 끝나면 SR이 칼슘을 도로 빨아들이고 근육은 이완합니다.
이 과정이 반복되면서 액틴이 안쪽으로 계속 끌려 들어옵니다. 그 결과 Z선과 Z선이 가까워지고 근절이 짧아집니다. 근절 하나가 줄어드는 거리는 아주 작지만, 이게 직렬로 수천 개 이어져 있으니 근육 전체로는 눈에 보이는 움직임이 됩니다.
여기서 헷갈리기 쉬운 부분이 있습니다. ATP는 수축에도 쓰이지만, 이완에도 반드시 필요합니다. 미오신 머리를 액틴에서 떼어내려면 새 ATP가 붙어야 하기 때문입니다.
사후강직이 이 원리로 설명됩니다. 사망 후 ATP가 완전히 고갈되면 미오신 머리가 액틴에 붙은 채로 떨어지지 못합니다. 그래서 몸이 굳습니다. 이완도 에너지가 드는 일이라는 걸 보여주는 사례입니다.
칼슘을 SR로 도로 퍼 올리는 펌프도 ATP를 씁니다. 훈련 후반부에 동작이 뻑뻑해지고 회복이 느려지는 데에는 이런 배경이 있습니다.
여기부터가 교정운동과 직접 연결되는 부분입니다.
근절이 내는 힘은 액틴과 미오신이 얼마나 겹쳐 있느냐에 달려 있습니다. 1966년 고든, 헉슬리, 줄리안이 개구리 근섬유 하나를 놓고 근절 길이를 바꿔가며 힘을 측정한 고전 연구가 있습니다.
▪ 적당하면 — 최대 힘이 나옵니다. 이 구간이 좁은 고원처럼 평평하게 나타났습니다.
▪ 너무 짧아지면 — 액틴끼리 서로 겹치고 미오신이 Z선에 부딪힙니다. 역시 힘이 떨어집니다.
즉 근육은 특정 길이에서 가장 강합니다. 그 길이를 벗어나면 근육이 게을러서가 아니라 구조적으로 힘을 못 냅니다.
더 흥미로운 건 근절의 개수 자체가 바뀐다는 점입니다.
신장성(편심성) 위주 훈련에서도 근절 수가 4~8% 늘어나는 것으로 보고됩니다. 반대로 단축성 위주로만 하면 줄어듭니다.
근절 수가 줄면 힘을 낼 수 있는 길이 구간 자체가 좁아지고 왼쪽으로 밀립니다. 근절 수가 늘면 그 구간이 넓어지고 오른쪽으로 옮겨갑니다.
거북목을 예로 들어보겠습니다. 목이 앞으로 밀린 자세를 오래 유지하면 뒤쪽 후두하근은 짧아진 채로, 앞쪽 심부굴곡근은 늘어난 채로 굳습니다.
이때 늘어난 쪽 근육에 대고 "약하니까 강화하자"고만 하면 절반만 맞는 이야기입니다. 그 근육이 약한 건 근섬유가 부실해서가 아니라, 힘을 잘 내는 길이 구간을 벗어난 채로 일하고 있기 때문입니다.
2. 늘어난 쪽을 그 새 범위 안에서 반복 수축시켜 제 길이를 찾게 합니다.
3. 그 자세를 일상 동작에서 유지하게 합니다. 근절 수는 습관적으로 머무는 길이에 맞춰 조정되기 때문입니다.
스트레칭만 해도, 강화만 해도 원래대로 돌아가는 이유가 여기에 있습니다.
또 하나. 근력운동에서 가동범위를 끝까지 쓰라는 조언에도 근거가 있습니다. 늘어난 구간에서 부하를 견디는 동작이 근절 수를 늘리는 방향으로 작용하기 때문입니다. 다만 저는 부상 이력이 있는 회원분께는 무게와 범위 중에 무게 통제를 먼저 잡습니다. 순서의 문제이지 범위가 필요 없다는 뜻은 아닙니다.
▪ 근섬유는 근내막, 근다발은 근주막, 근육 전체는 근외막이 감쌉니다.
▪ 수축의 기본 단위는 근절입니다. Z선과 Z선 사이 한 칸입니다.
▪ A대는 미오신 구간이라 어둡고, I대는 액틴만 있어 밝습니다.
▪ 수축해도 A대는 그대로고 I대와 H대만 짧아집니다. 이것이 활주설입니다.
▪ 미오신 머리에 ATP 분해효소가 있어 교차다리를 만들고 젖힙니다.
▪ T세관은 세포막이 함입된 관이고, SR은 칼슘 창고입니다. 둘은 통하지 않습니다.
▪ 종말수조 - T세관 - 종말수조가 삼련구조입니다.
▪ 이완에도 ATP가 필요합니다. 사후강직이 그 증거입니다.
▪ 근육은 특정 길이에서 가장 강합니다. 근절 수는 습관적 길이에 맞춰 조정됩니다.
현장에서 이 내용을 그대로 설명할 일은 거의 없습니다. 회원분께 트로포닌 이야기를 꺼낼 일은 없으니까요. 그런데 알고 나면 말이 달라집니다.
"이 근육이 약해요"와 "이 근육이 지금 힘을 못 내는 길이에 놓여 있어요"는 다른 말입니다. 뒤쪽 설명을 할 수 있으면 프로그램 순서가 바뀌고, 회원분도 왜 이 동작부터 하는지 납득하십니다.
기본 구조를 아는 게 그래서 필요합니다.
2. Huxley H, Hanson J. Changes in the cross-striations of muscle during contraction and stretch. Nature. 1954;173(4412):973-976
3. Gordon AM, Huxley AF, Julian FJ. The variation in isometric tension with sarcomere length in vertebrate muscle fibres. J Physiol. 1966;184(1):170-192
4. Janssen I, Heymsfield SB, Wang Z, Ross R. Skeletal muscle mass and distribution in 468 men and women aged 18-88 yr. J Appl Physiol. 2000;89(1):81-88
5. Franzini-Armstrong C. Studies of the triad: I. Structure of the junction in frog twitch fibers. J Cell Biol. 1970;47(2):488-499
6. Meissner G, Lu X. Dihydropyridine receptor-ryanodine receptor interactions in skeletal muscle excitation-contraction coupling. Biosci Rep. 1995;15(5):399-408
7. Zhou Q et al. In situ structural insights into the excitation-contraction coupling mechanism of skeletal muscle. Sci Adv. 2024;10(12):eadl1126
8. Williams PE, Goldspink G. Changes in sarcomere length and physiological properties in immobilized muscle. J Anat. 1978;127(Pt 3):459-468
9. Hinks A et al. The importance of serial sarcomere addition for muscle function and the impact of aging. J Appl Physiol. 2023
10. Franchi MV et al. Architectural, functional and molecular responses to concentric and eccentric loading in human skeletal muscle. Acta Physiol. 2014;210(3):642-654
11. Randolph ME, Pavlath GK. A muscle stem cell for every muscle. Front Aging Neurosci. 2015;7:190
12. Saladin KS. Anatomy and Physiology: The Unity of Form and Function. 2018
공덕역 3번출구 도보 3분 · 02-711-1815
ptgym.co.kr
이 글은 운동 지도를 위한 기초 자료이며 의학적 진단이나 치료를 대신하지 않습니다.
 대흥 교정운동 PT | 근육은 어떻게 힘을 내기 시작하는가 — 운동...
 아현 교정운동 PT | 근방추와 근막경선 - 몸은 부분이 아니라 선...


